
Kiedy noc przestaje być nocą: jak oświetlenie LED i świąteczne iluminacje wpływają zimą na drzewa (i jak mądrze temu zaradzić)
Specjalne podziękowanie dla Agnieszki za inspirację do tego wpisu…
Współczesna arborystyka kładzie ogromny nacisk na mechanikę drzew, profilaktykę cięć czy bilans wodny w glebie zurbanizowanej. W cieniu tych zagadnień pozostaje jednak czynnik, który w ostatnich dekadach przeszedł diametralną metamorfozę: nocne zanieczyszczenie światłem (ALAN – Artificial Light at Night). Przejście z tradycyjnych opraw sodowych na wysokowydajne diody LED zbiegło się z powszechną modą na całonocne iluminacje architektoniczne oraz gęste oprawy świąteczne montowane bezpośrednio na koronach. Z punktu widzenia fizjologii rośliny, zimowa noc przestała być sygnałem fenologicznego bezpieczeństwa.
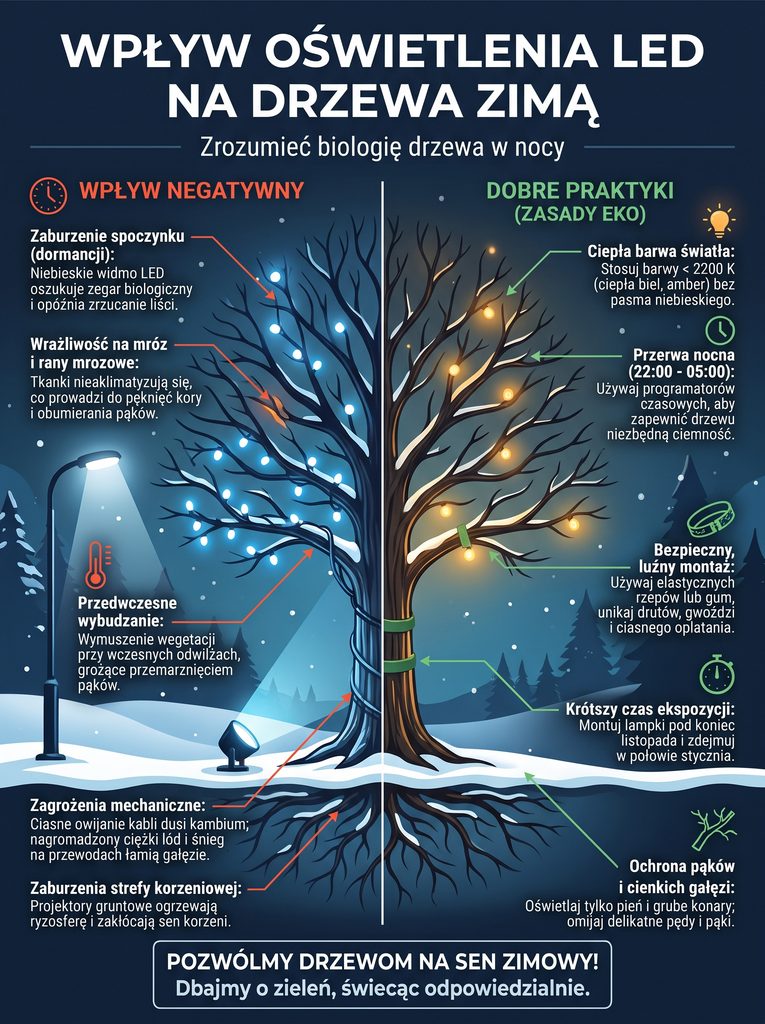
Fotorecepcja a dormancja: biochemiczny mechanizm zegara
Drzewa strefy umiarkowanej nie wchodzą w endodormancję pod wpływem spadków temperatury – ta bywa zbyt niestabilna. Nadrzędnym stymulatorem jest fotoperiod, rejestrowany przez wyspecjalizowany układ fotoreceptorów:
- Układ fitocromowy: fitocrom Pr (absorbujący czerwień ≅ 660 nm) oraz jego aktywna biologicznie forma Pfr (absorbująca daleką czerwień ≅ 730nm).
- Kryptochromy i fototropiny: wrażliwe na pasmo niebieskie i bliski UV (320–500nm).
W warunkach naturalnych długa, nieprzerwana noc pozwala na powolną, ciemną rewersję formy Pfr do nieaktywnej Pr. Proces ten jest dla komórek merystematycznych sygnałem do syntezy kwasu abscysynowego (ABA), indukowania apikalnego pąka spoczynkowego oraz budowy strefy odcinającej w ogonkach liściowych.
W tym miejscu uwidacznia się problem diod LED. W odróżnieniu od lamp sodowych (HPS), emitujących wąskie pasmo w ≅ 589\nm, standardowa biała dioda LED bazuje na luminoforze wzbudzanym emiterem o ostrym piku w paśmie niebieskim (≅450 nm). To spektrum uderza bezpośrednio w kryptochromy, a wtórna emisja w zakresie czerwieni blokuje ciemną rewersję fitocromów. Roślina otrzymuje biochemiczny sygnał trwającego dnia polipolarnego, co destabilizuje szlak sygnałowy ABA.
Patologia zimowa: od rozhartowania do pęknięć mrozowych
Skutki deregulacji fotoperiodycznej mają bezpośrednie przełożenie na kondycję anatomiczną tkanek:
- Zaburzenie procesu aklimatyzacji do mrozu: Wchodzenie w spoczynek wymaga odwodnienia symplastu na rzecz apoplastu oraz nagromadzenia w cytoplazmie krioprotektantów (rafinozy, sacharozy, białek LEA). Tkanki poddane stałemu naświetlaniu utrzymują wyższy turgor i metabolizm. Przy nagłym ataku mrozu woda zamarza wewnątrzkomórkowo, niszcząc tonoplast i błony plazmatyczne.
- Lokalna marcescencja i wyłamania: Brak wykształconej warstwy odcinającej powoduje retencję obumarłych liści na pędach bezpośrednio oświetlanych. Zwiększa to opór aerodynamiczny zimą oraz powierzchnię retencji mokrego śniegu, wielokrotnie potęgując ryzyko rozłamywania rozwidleń.
- Przedwczesne wyjście z ekodormancji: Na przedwiośniu doświetlane pąki wykazują obniżony próg termiczny niezbędny do wznowienia podziałów mitotycznych. Pierwsze ocieplenia wywołują nieodwracalne pęcznienie pąków, które ulegają martwicy podczas powrotnych przymrozków.
Reflektory gruntowe generują dodatkowy problem: oświetlają abaksjalną (spodnią) stronę pędów i blaszek liściowych, która ma cieńszą kutykulę i nie jest przystosowana do absorpcji tak gęstego strumienia fotonów. Co więcej, radiatory opraw dużej mocy rozgrzewają strefę ryzosfery i szyi korzeniowej, rozregulowując metabolizm spoczynkowy korzeni szkieletowych.
Świąteczne girlandy: stres mechaniczny i kontaktowy
Instalacja łańcuchów LED na pniach i gałęziach wprowadza dodatkowe zagrożenia mechaniczne, dobrze znane z praktyki inspekcji drzew:
- Kompresja kambium i zaciśnięcie floemu: Stosowanie opasek zaciskowych z tworzywa oraz ciasne, helikoidalne owijanie kabli wokół młodych osi pędowych powoduje lokalny ucisk na tkanki twórcze. Na przedwiośniu, w fazie intensywnego odkładania drewna wczesnego, przewody wrastają w korowinę, blokując zstępujący transport asymilatów.
- Ekspozycja merystemów: Bezpośrednie przyleganie diody LED do pąka zimującego wywołuje mikrostres fotochemiczny w skrajnie małej odległości, skutkujący punktową nekrozą zawiązków liściowych.
- Zjawisko okiści lodowej: Kable drastycznie zwiększają powierzchnię dla krystalizacji szadzi i lodu, wielokrotnie przekraczając nośność mechaniczną pędów III i IV rzędu.
Wytyczne dla praktyki ogrodniczej i arborystycznej
Aby ograniczyć negatywny wpływ oświetlenia sztucznego, warto wdrożyć ścisłe reżimy techniczne:
- Charakterystyka spektralna: W strefie oddziaływania koron dopuszcza się wyłącznie źródła o skorelowanej temperaturze barwowej poniżej 2200K (diody bursztynowe / PC-Amber). Eliminacja pasma niebieskiego (<500nm) zapobiega aktywacji kryptochromów.
- Reżim czasowy: Bezwzględne stosowanie sterowników zegarowych wyłączających oświetlenie w oknie 22:00–05:00. Zapewnia to minimum 7 godzin niezakłóconej rewersji fitocromów.
- Harmonogram fenologiczny: Montaż instalacji dekoracyjnych dopiero po zakończeniu procesu zrzucania liści i nadejściu pierwszych mrozów (pełna endodormancja); demontaż obligatoryjnie do połowy stycznia, przed fazą akumulacji stopniodni.
- Bezinwazyjne mocowanie: Zakaz stosowania opasek samozaciskowych, zszywek i drutów. Kable należy podwieszać luźno na szerokich pasach parcianych lub taśmach rzepowych, wyłącznie wzdłuż pnia i konarów I rzędu, z zachowaniem marginesu na dynamiczną pracę drzewa na wietrze.
Podsumowanie dobrych praktyk
| Niekorzystne dla drzewa | Wariant bezpieczny / rekomendowany | |
| Temperatura barwowa | Zimna biel (4000–6500 K) | Ekstra ciepła biel / amber (1800–2200 K) |
| Czas świecenia | Całonocne (od zmierzchu do świtu) | Do 22:00/23:00 (zegar astronomiczny) |
| Okres ekspozycji | Październik – marzec | Koniec listopada – połowa stycznia |
| Mocowanie | Trytytki, druty, ciasny oplot | Szerokie taśmy rzepowe, luźny splot |
| Lokalizacja lampek | Cienkie pędy szczytowe i pąki | Pień i grube konary szkieletowe |
Jeśli zyskujesz czytając ten wpis możesz pomóc mi pisać więcej….


